
В Республике Беларусь заболевания энцефалитами, в том числе клещевым энцефалитом, описывались М. А. Хазановым еще в 1929 году.
Начало систематического изучения клещевого энцефалита на территории Беларуси положено работами М. П. Чумакова с сотрудниками (1939-1943), доказавшего наличие природных очагов этого заболевания в ряде районов республики. В дальнейшем очаги клещевого энцефалита Беларуси изучались Л. А. Зильбером с сотрудниками (Л. А. Зильбер, 1946; Л. А. Зильбер и М. С. Захарова, 1949; М. С. Захарова, 1949; С. С. Фолитарек и др., 1949); экспедициями под руководством Н. И. Гращенкова и А. А. Смородинцева (Н. И. Гращенков и др., 1951; Л. В. Федорчук, 1954).
Институтом эпидемиологии, микробиологии и гигиены Министерства здравоохранения, организуются эпидотряды для изучения очагов клещевого энцефалита в различных районах республики.
Иксодовые и гамазовые клещи, блохи, кровососущие комары
Видовой состав и распространение кровососущих членистоногих, возможных участников круга циркуляции вируса клещевого энцефалита, изучались на протяжении многих лет в очагах заболевания на территории различных природных районов республики, сбором кровососов в открытой природе и сбором эктопаразитов с домашних и диких животных.
За период работы обследовано на предмет зараженности эктопаразитами 4607 экземпляров диких животных, относящихся к 125 видам и 11084 головы домашних животных. Собрано и определено 216605 экземпляров иксодовых клещей, 3956 гамазовых клещей, 21452 экземпляра блох и 10156 кровосусущих комаров.
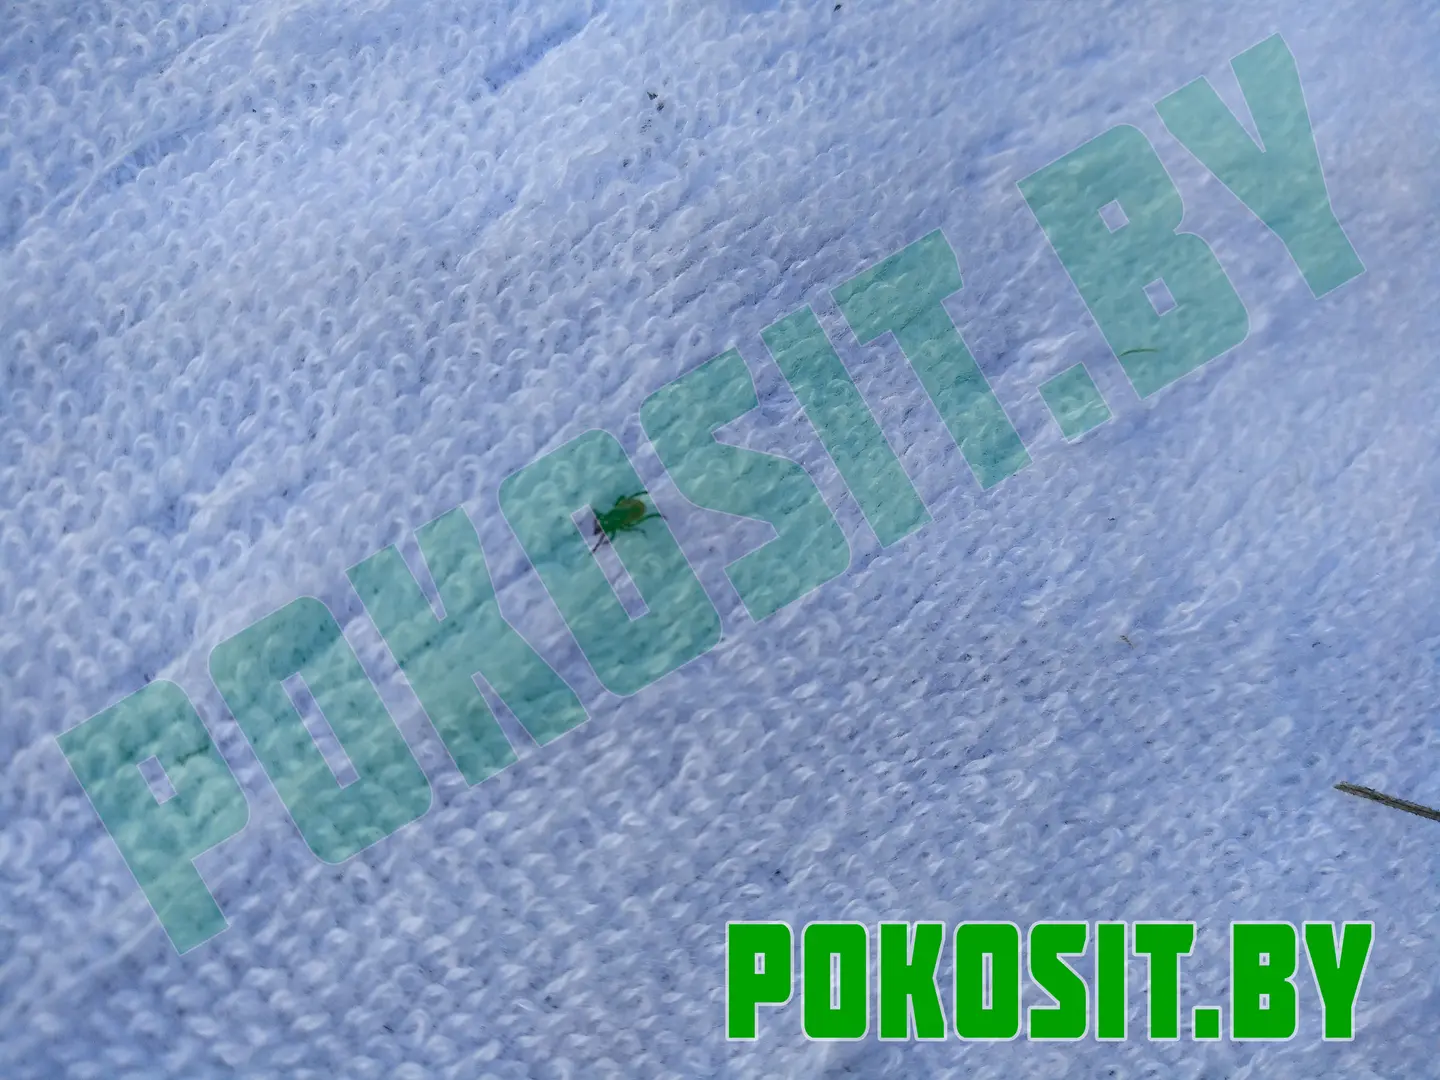
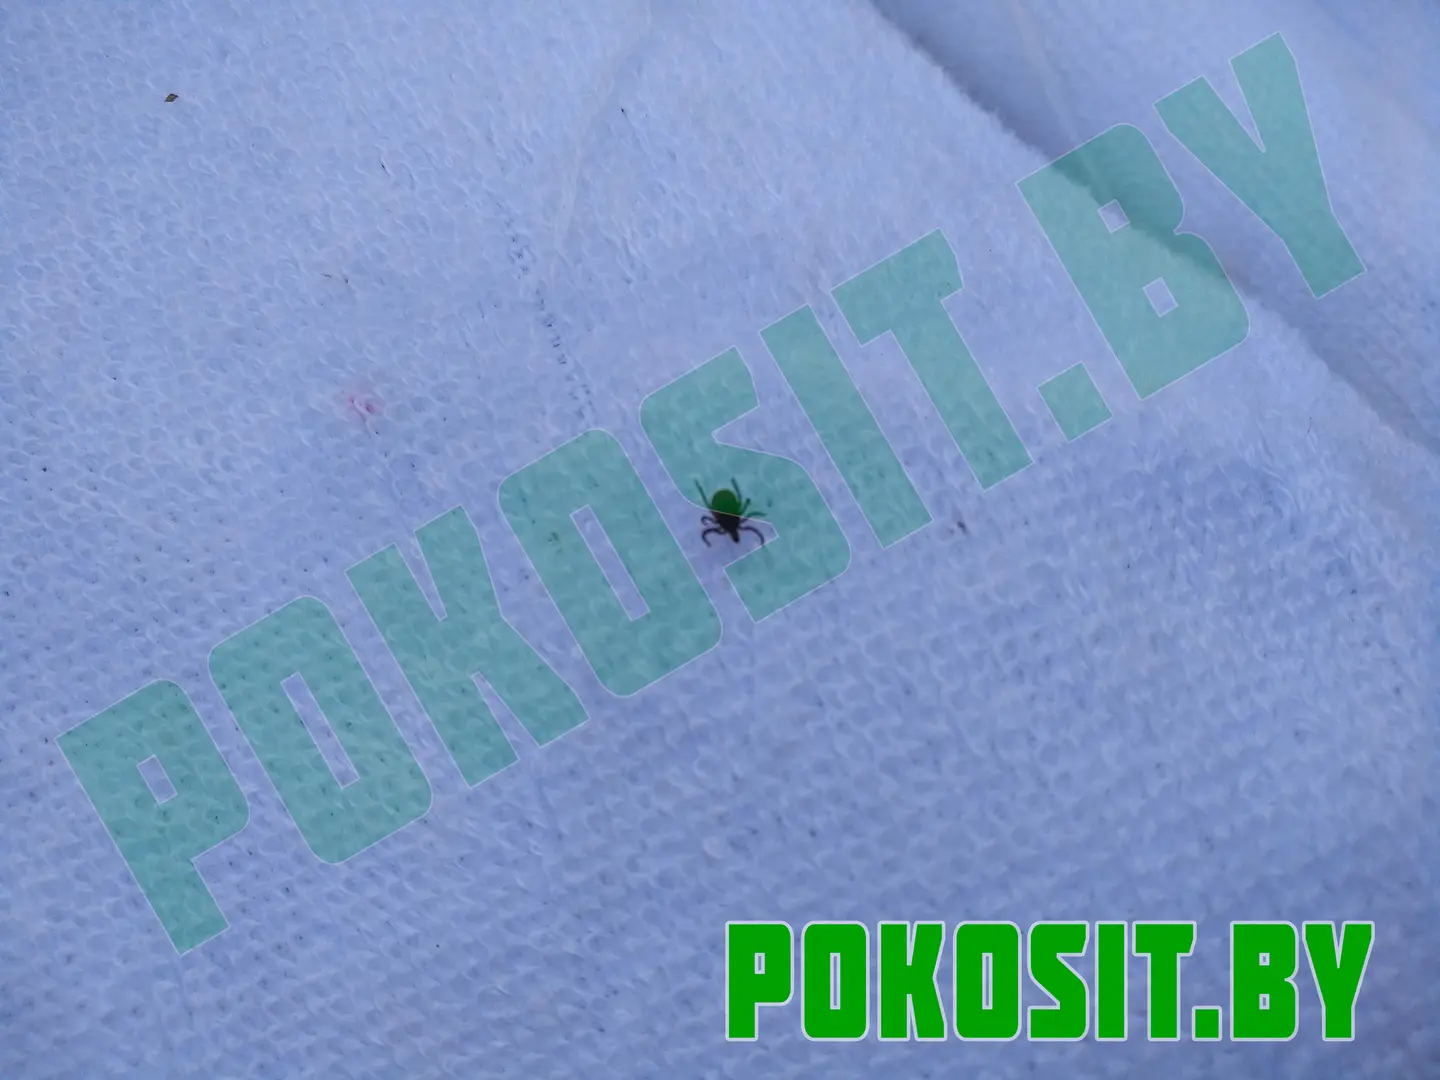
В очагах клещевого энцефалита найдено 9 видов иксодовых клещей1: Ixodes ricinus L., I. persulcatus P. Sch., I. crenulatus Koch., I. frontalis (Panz.), I. trianguli- ceps Bir., Dermacentor pictus Herm., D. marginatus (Sulz),
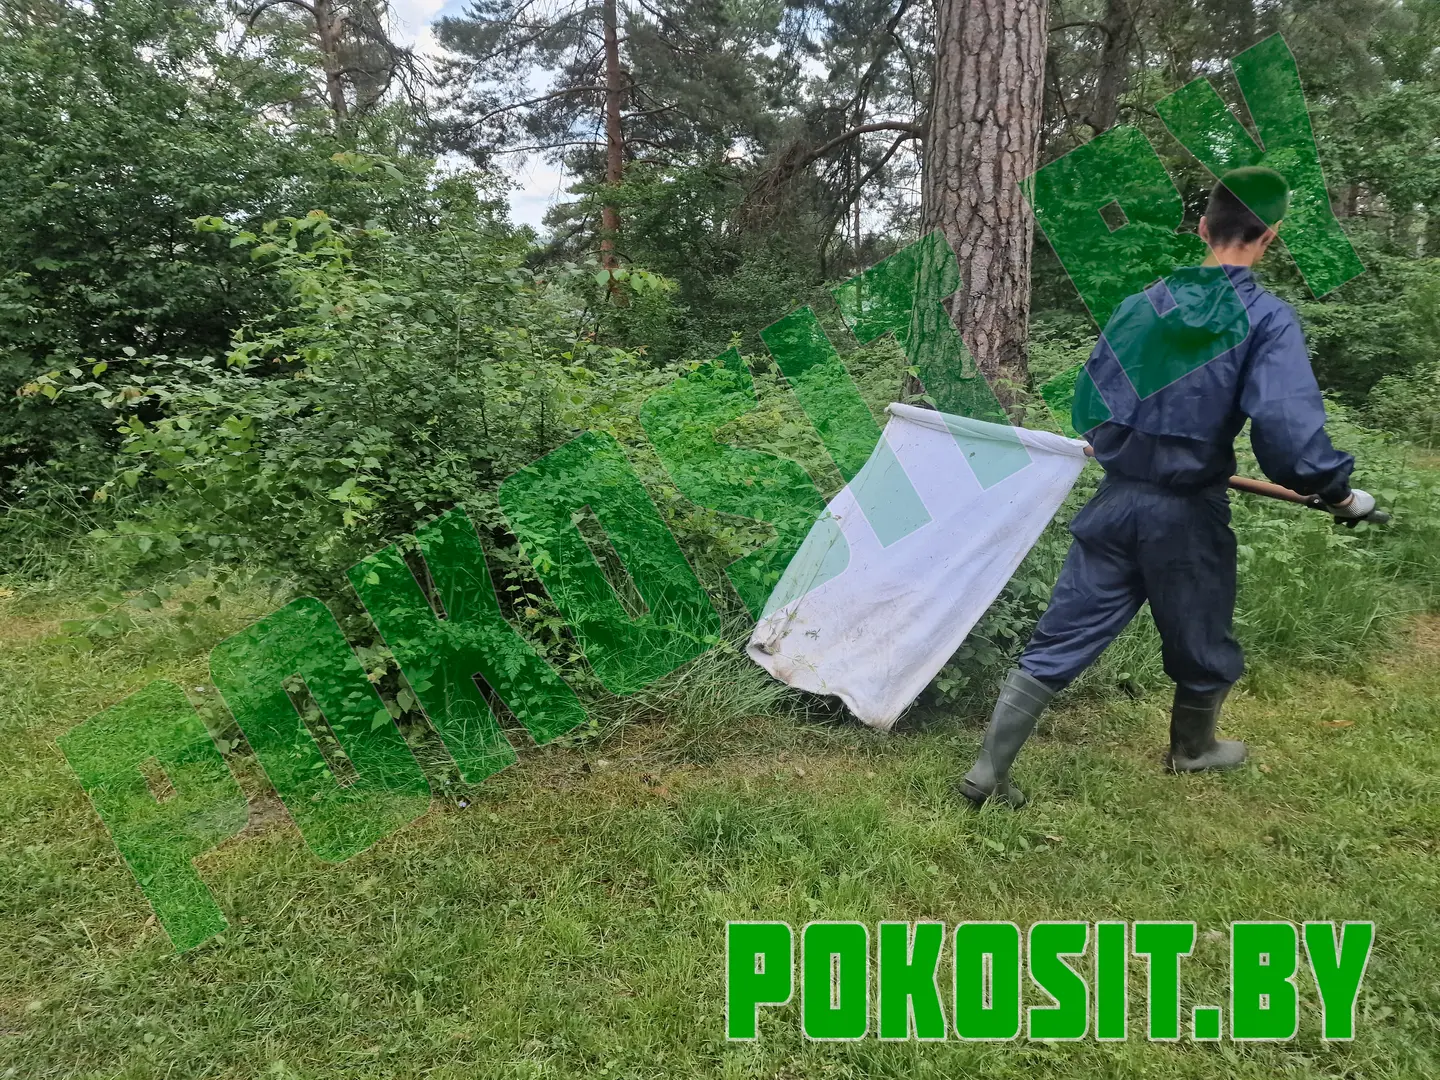
Сравнительно высокая численность D. pictus (до 6 нападений в среднем за один час сбора флагом) отмечена на периферии очагов, на опушках сосново-лещиновой субори, елово-широколиственного леса, сосняка вересково- черничного, а также в молодых сосняках, березняках, на вырубках и суходольных лугах с кустарником.
Клещи I. trianguticeps и I. apronophorus в очагax заболевания найдены только на диких животных и составляют 0,1 % от числа собранных клещей. Круг прокормителей I. trianguliceps ограничивается 5 видами мышевидных грызунов, одним видом насекомоядных и одним видом птиц (Большой пестрый дятел — Dendrocopos major L.). I. аpronophorus обнаружен на 8 видах мыше- видных грызунов, обыкновенной бурозубке (Sorex ага- neus L.) и двух видах птиц (белая трясогузка — Motacilla alba L. и черный дрозд — Turdus merula L.).
Остальные виды иксодовых клещей найдены единичными экземплярами и встречались не во всех обследованных очагах заболевания. Клещи D. marginatus найдены на крупном рогатом скоте в одном очаге заболевания. I. persulcatus, I. crenulatus, I. frontalis и H. concinna найдены только на диких животных.
На основании данных по биологии, распространению и численности иксодовых клещей, в сочетании с данными вирусологических и эпидемиологических исследований, можно сделать вывод, что основным передатчиком вируса человеку и восприимчивым животным (козам) в очагах клещевого энцефалита Беларуси является клещ I. ricinus. Второй распространенный в очагах заболевания вид иксодового клеща — D. pictus, очевидно, может принимать участие в передаче вируса восприимчивым животным и вынесении инфекции за пределы биотопов характерных для клеща I. ricinus, что подтверждается данными о выделении вируса из имаго D. pictus, собранных в очагах клещевого энцефалита на территории Беларуси.
Из гамазовых клещей в обследованных очагах наиболее многочисленными на диких животных являются L. agilis, L. muris, Hg. nidi, L. hilaris; в гнездax — Hl. casalis, HI. glasgowi. Среди комаров многочисленны лесные виды: Ae. communis, Ae. maculatus. Из блох преобладают L. segnis, Ct. agyrtes, Cer. turbidus.
Вопрос о способности этих кровососов передавать вирус клещевого энцефалита до сих пор не является окончательно решенным. При наличии способности передавать вирус восприимчивым животным, наиболее многочисленные лесные виды комаров, проделывающие большое число гонотрофических циклов, могут принимать участие в выносе вируса за пределы очагов и передаче его животным по экологической приуроченности не контактирующим с клещом I. ricinus.
Роль таких видов клещей как I. trianguliceps и I. apronophorus, массовых видов гамазовых клещей и блох, в таком случае, может быть сведена к осуществлению циркуляции вируса в межэпидемический период и участию в распространении эпизоотии, путем передачи вируса молодым зверькам в гнездах.
Пути оздоровления очагов клещевого энцефалита в обжитой местности.
На территории Беларуси выделяется два типа очагов клещевого энцефалита: очаги I рода (дикие лесные очаги) и очаги II рода (очаги лесных пастбищ), в основу классификации которых положены зоолого-паразитологические различия, а также особенности эпидемиологии, характер заболеваемости и пути заражения населения. Очаги обоих типов могут быть расположены как в богатых фауной, высоковозрастных заповедных лесах (Беловежская Пуща), так и в обедненных, часто изреженных, вторичных лесах густонаселенных районов.
Основным зоолого-паразитологическим отличием диких лесных очагов (очаги I рода) является то, что прокормителями клеща-переносчика в этих очагах служат исключительно дикие животные. Домашние животные в балансе прокормителей I. ricinus в диких лесных очагах значения не имеют. В очагах заповедных лесов этого типа круг прокормителей I. ricinus включает большое число видов диких животных, численность которых здесь велика, что приводит к высокой концентрации клещей-переносчиков. Обилие активно нападающих имаго, нимф и личинок в заповедных лесах не используемых для выпаса скота, соответственно, 1,4; 17,2; и 2,8. В незаповедных лесах численность животных-прокормителей значительно ниже в результате чего концентрация I. гicinus здесь более чем в 5 раз меньше (индекс обилия личинок — 0,1; нимф-0,1; имаго-1,0 нападений за 1 час сбора флагом).
Распределение I. ricinus по биотопам диких лесных очагов заповедных лесов отличается сравнительной равномерностью. Так, численность I. ricinus в различных типах леса Беловежской Пущи составляет: в сосняках 20,0; широколиственных лесах — 21,5; ельниках — 24,0 нападения в среднем за 1 час сбора флагом.
В отличие от заповедных лесов, распределение I. ricinus в диких лесных очагах незаповедных лесов очень неравномерно. В очагах незаповедных лесов Минской области численность I. ricinus в елово-широколиственныхлесах — 3,1; суборях — 2,6; ольсах — 0,8; а в сосняках и различных молодняках клещи вообще не найдены.
Можно сказать, что, практически, в незаповедных лесах зоны елово-широколиственных лесов, не используемых для выпаса скота, I. ricinus встречается только в елово-широколиственных формациях и суборях, однако, даже в елово-широколиственных лесах этого типа очагов, численность клещей очень невелика (от 1,8 в дубово- елово-лещиновых лесах до 5,0 в ельниках приручейно- черничных, нападений за один час сбора флагом).
Очаги II рода (очаги лесных пастбищ) в Беларуси распространены значительно более широко и являются основным типом природных очагов клещевого энцефалита. Главной отличительной чертой этого типа очагов, расположенных как в заповедных, так и в незапо- ведных лесах, является наличие, в качестве основных прокормителей имаго I. ricinus, домашних животных, главным образом крупного рогатого скота, что создает возможности для увеличения численности переносчика, по сравнению с лесами не служащими для выпаса скота. Особенно высокая численность клещей отмечена в очагах лесных пастбищ заповедных лесов. Так, в служащих для выпаса скота лесах Беловежской Пущи, численность I. ricinus колеблется от 56,5 (в широколиственных лесах) до 132,0 (в ельниках) нападений в среднем за один час сбора флагом.
В очагах лесных пастбищ незаповедных лесов плотность I. ricinus значительно ниже, но и здесь она значительно превышает численность клещей в соответствующих лесах не служащих для выпаса скота (средний сезонный индекс обилия имаго, нимф и личинок в диких лесных очагах — 1,3; в очагах лесных пастбищ — 6,3 нападений за один час сбора флагом).
Обилие I. ricinus на домашних животных в очагах лесных пастбищ составляет на крупном рогатом скоте 9,1; козах — 3,1; лошадях — 1,6; овцах — 0,08 клещей в среднем на одно осмотренное животное.
Из диких животных прокормителями имаго в очагах лесных пастбищ незаповедных лесов являются 12 видов мелких млекопитающих и птиц, среди которых наибольшее значение имеют заяц-русак — Lepus europaeus Pall., заяц-беляк — Lepus timidus L., енотовидная собака — Nyctereutes procionoides Gray., обыкновенный еж — Erinaceus europaeus L., лисhцa — Vulpes vulpes L. (индексы заклещевания соответственно, 4,8; 4,4; 4,0; 2,2; 2,0). Обилие имаго на остальных видах диких животных — про- кормителей от 0,004 (землеройки) до 0,3 (глухарь Tetrao urogallus L.).
Круг прокормителей нимф и личинок в очагах лесных пастбищ очень широк. Прокормителями нимф является 41 вид диких и 6 видов домашних животных, из которых наиболее заражены клещами обыкновенная белка Sciurus vulgaris L., обыкновенный еж, рябчик — Tetrastes bonasia L., водяная полевка — Arvicolla terrestris L., ящерица прыткая — Lacerta agilis L., заяц-русак, лесной конек — Anthus trivialis L., дрозд деряба — Turdus viscivorus L., певчий дрозд — Turdus ericetorum Turt. (индексы заклещевения, соответственно, 15,0; 8,1; 6,2; 1,6; 1,2; 1,1; 1,1; 1,1; 1,0).
Личинки I. ricinus в очагах лесных пастбищ найдены на 40 видах диких и 2 видах домашних животных. Наибольшее количество личинок найдено на полевой мыши Apodemus agrarius Pall., рябчике, обыкновенной белке, ящерице прыткой, обыкновенной полевке — Мicrotus arvalis Pall. , водяной полевке, певчем дрозде, желто- горлой мыши — Apodemus flavicollis Melch., рыжей европейской полевkе — Clethrionomys glareolus Schreb., лесной мыши — Apodemus silvaticus 1., (индексы заклещевания, соответственно, 3,9; 3,5; 3,3; 3,1; 2,5; 2,2; 2,0; 1,8; 1,5; 1,5).
Введение в биоценозы очагов лесных пастбищ домашних животных-прокормителей имаго I. ricinus, как уже говорилось, приводит к резкому увеличению численности переносчика в этих очагах, что обуславливает вовлечение в круг прокормителей личинок и нимф большого количества видов млекопитающих, птиц и даже пресмыкающихся, и создает добавочные возможности для иррадиации переносчика по территории очага. Однако, ряд биотопов очагов лесных пастбищ изреженных, часто вторичных, лесов густонаселенных районов, не обладают минимумом микроклиматических условий необходимых для развития I. ricinus. Поэтому увеличение численности переносчика в этих очагах происходит не повсеместно, а только в тех участках, где, наряду с наличием выпаса скота, имеются благоприятные микроклиматические условия для развития I. ricinus — «элементах высокой клещевой численности». В остальных биотопах очага численность I. гіcinus очень мала — «элементы низкой клещевой численности», или клещи вообще отсутствуют «Бесклещевые элементы».
В очагах расположенных на территории центрального (переходного) лесорастительного района еловоширолиственных лесов, где зарегистрировано большинство очагов клещевого энцефалита Беларуси, элементами высокой клещевой численности являются елово-широко- лиственные леса и субори (средний сезонный индекс обилия I. ricinus 18,8 и 8,4 нападений за 1 час сбора флагом).
К элементам низкой клещевой численности в очагах центрального района относятся высоковозрастные сосняки, ольсы, некоторые виды молодняков. Обилие I. ricinus в этих биотопах составляет, соответственно, 3,5; 0,4; 0,3 нападений в среднем за 1 час сбора флагом. Бесклещевыми элементами являются формации биотопов избыточного увлажнения (сосняки сфагновые, ольсы-крапивно- таволговые, ельниковые, осоковые), сосняки беломошники, изреженные сосняки-черничники, и молодые сосновые насаждения.
Изучение сезонной динамики численности активно нападающих I. ricinus в природе и на животных-прокормителях показало, что сроки активности имаго, нимф и личинок этого вида в условиях Беларуси не совпадают, отставая друг от друга на 1-2 декады. В центральных районах начало активности имаго отмечено в третьей декаде апреля — первой декаде мая; нимф — во второй декаде мая; личинок в третьей декаде мая — первой декаде июня. Поэтому, для истребления всего запаса клещей на местности, при помощи акарицидов с малым остаточным действием, требуется повторение обработок в период начала массовой активности каждой из фаз развития клеща. Такие обработки мы назвали «направленными».
На основании изучения распространения I. ricinus по биотопам очагов лесных пастбищ, мы пришли к выводу о возможности истребления переносчика в этих очагах, путем «выборочных» обработок элементов высокой клещевой численности. Проведение таких обработок позволяет значительно сократить обрабатываемую площадь, а следовательно, уменьшить затраты на обработку и вред приносимый противоклещевыми обработками полезной энтомофауне. На территории центрального переходного района смешанных елово-широколиственных лесов, где, как уже говорилось, элементами высокой клещевой численности являются елово-широколиственные леса и субори, на долю этих насаждений приходится 25% лесопокрытой площади, а на территории западного (Неманского) района елово-широколиственных лесов — всего 20%, что дает возможность, при выборочных обработках, сократить обрабатываемую площадь в 4-5 раз, а в целом по республике, почти в 10 раз по сравнению со сплошными обработками.
Элементами высокой клещевой численности в очагах каждого природного района являются однотипные по микроклиматическим условиям биотопы (например елово-широколиственные леса для очагов центрального лесорастительного района) сроки начала активности клеща в которых совпадают, что позволяет установить время проведения обработок на основе фенологических наблюдений, и проводить их в одинаковые сроки для всего района.
Выводы
- В очагах клещевого энцефалита Беларуси найдено 9 видов иксодовых клещей, 50 видов гамазовых клещей, 18 видов кровососущих комаров и 21 вид блох. Изучение распространения и экологии этих кровососов позволяет сделать вывод, что передача вируса от диких животных человеку и восприимчивым животным — козам в обследованных очагах осуществляется одним видом паразита — клещом I. ricinus.
- Широкое распространение в очагах заболевания большого количества различных кровососов, в том числе ряда видов способных к передаче вируса клещевого энцефалита, требует дальнейшего изучения их роли в циркуляции вируса.
- На основании изучения распространения и экологии кровососущих членистоногих в очагах заболевания можно сделать вывод, что клещи I. trianguliceps, I. apro- рhorus, массовые виды кровососущих гамазовых клещей (Hg. nidi, E. stabularis, HI. glasgowi), наиболее распространенные виды блох (L. segnis, Ct. agirtes, Ct. uncinatus, Cer. turbidus) могут принимать участие в циркуляции вируса среди диких животных в межэпизотический период и участвовать в распространении возбудителя в период эпизоотии, в быстрые сроки передавая его воспрнимчивым животным. Клещи D. pictus и наиболее распространенные лесные виды комаров, про- делывающие большое число гонотрофических циклов (Ae. maculatus, Ae. communis), могут принимать участие в выносе вируса за пределы биотопов, характерных для клеща I. ricinus, на периферию очагов, и передаче его животным по экологической приуроченности не контактирующим с клещом I. ricinus.
- На территории Беларуси имеется два типа природных очагов клещевого энцефалита: очаги I рода (дикие лесные очаги) и очаги II рода (очаги лесных пастбищ). Основным зоологопаразитологическим отличием очагов лесных пастбищ является включение в круг хозяев переносчика-клеща I. гicinus, домашних животных в качестве основных прокормителей имагинальных фаз развития клеща. Следствием этого является резкое увеличение численности переносчика и неравномерность его распределения в различных биотопах очага.
- Оздоровление наиболее важных в эпидемиологическом отношении очагов лесных пастбищ незаповедных лесов густонаселенной местности может производиться по двум направлениям: истреблением I. rіcinus на домашних животных — основных прокормителях взрослых клещей и истреблением клещей на местности.
- Круг животных прокормителей личинок и нимф I. ricinus в очагах клещевого энцефалита Беларуси включает, кроме мышевидных грызунов, большое количество видов диких и домашних животных, что делает невозможным оздоровление очагов при помощи дератизационных мероприятий, направленных на истребление мышевидных грызунов, как основных прокормителей личинок и нимф клеща.
- Неравномерность распределения переносчика-клеща I. ricinus по биотопам очагов лесных пастбищ позволяет рекомендовать для оздоровления этого типа очагов проведение выборочных противоклещевых обработок мест концентрации переносчика — «элементов высокой клещевой численности» (для центральных районов республики елово-широколиственные леса и субори).
- Для летних и весенних противоклещевых обработок в очагах лесных пастбищ возможно применение акарицидных средств не обладающих длительным остаточным действием, путем проведения направленных обработок в период начала массовой активности каждой из фаз развития клеща (имаго, нимфы, личинки).